
Turing-Muster: Die Mathematik von Flecken & Streifen
· 4 Min. Lesezeit
Mit KI-Unterstützung verfasst. Fehler entdeckt? Schreib an hello@geopatternlab.com.
Von den Labyrinthen auf den Schuppen des Kaiserfischs bis zum gefleckten Fell des Leoparden: Die Natur erzeugt komplexe Muster durch einfache chemische Rückkopplungsschleifen. Alan Turings bahnbrechende Theorie der Morphogenese zeigte, wie zwei wechselwirkende Substanzen aus völliger Gleichförmigkeit spontan faszinierende Ordnung erschaffen können.
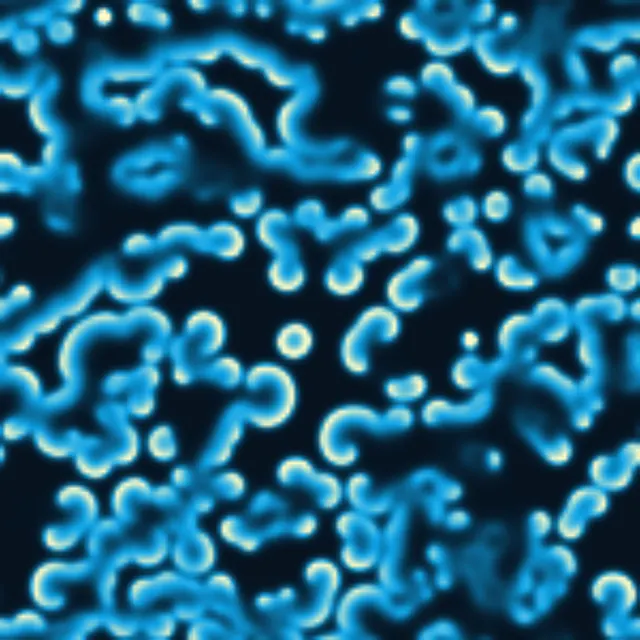 Reaktionsdiffusion ausprobierenGray-Scott-Chemie, aus der organische Punkte, Streifen und Korallenstrukturen wachsen.
Der Durchbruch der Morphogenese
1952 veröffentlichte der Mathematiker Alan Turing seine Arbeit 'The Chemical Basis of Morphogenesis' und wandte sich damit von der Kryptografie und Informatik der theoretischen Biologie zu. Turing fragte sich, wie aus einem anfangs symmetrischen, gleichförmigen Zellhaufen zuverlässig ein Organismus mit klarer Kopf-Schwanz-Achse, Gliedmaßen und charakteristischen Oberflächenmustern entstehen kann. Seine Hypothese: Biologische Formen bilden sich durch das Zusammenspiel hypothetischer chemischer Botenstoffe, die er Morphogene nannte.
Statt auf einen zentralen Bauplan oder eine mikroskopische Karte setzte Turing auf chemische Systeme, die zwei simultane Prozesse durchlaufen: lokale chemische Reaktion und räumliche Diffusion. Diese Systeme können auf kontrollierte Weise instabil werden. Durch diesen spontanen Symmetriebruch verstärken sich winzige, zufällige Konzentrationsschwankungen zu stabilen, periodischen Raumstrukturen, die wir heute als Turing-Muster kennen.
Die Aktivator-Inhibitor-Dynamik
Im Herzen von Turings Modell steht ein Zwei-Komponenten-System, das meist als Aktivator und Inhibitor beschrieben wird. Der Aktivator kurbelt seine eigene Produktion an und erzeugt gleichzeitig den Inhibitor. Der entscheidende Kniff: Der Inhibitor diffundiert wesentlich schneller durch das Gewebe als der Aktivator. Dieses Grundprinzip nennt man lokale Aktivierung und weitreichende Hemmung.
Reichert sich der Aktivator an einer Stelle an, stößt er dort die Bildung des Inhibitors an. Weil der Inhibitor rasch nach außen strömt, bildet er einen schützenden Wall, der das Entstehen weiterer Aktivator-Zentren im unmittelbaren Umkreis unterdrückt. Erst dort, wo die Konzentration des Inhibitors nachlässt, kann eine neue Aktivator-Spitze aufkeimen. Je nach Reaktionsgeschwindigkeit und Diffusionskonstante pendelt sich dieses Kräftemessen in verschiedenen Mustern ein: isolierte Punkte, verwinkelte Labyrinthe, parallele Streifen oder wandernde Wellen.
Das Gray-Scott-Modell in der generativen Kunst
Während Turings ursprüngliche Gleichungen mit linearen Näherungen arbeiteten, nutzen digitale Kreative heute meist das nichtlineare Gray-Scott-Modell aus den 1980er-Jahren. In diesem System diffundieren zwei virtuelle Chemikalien, meist U und V genannt, über ein zweidimensionales Gitter und reagieren autokatalytisch miteinander. Chemikalie U wird dem System mit einer festen Zufuhrrate (Feed rate (F)) hinzugefügt, während Chemikalie V mit einer bestimmten Abbaurate (Kill rate (k)) entfernt wird.
Schon minimale Änderungen an Feed rate (F) und Kill rate (k) entfesseln einen verblüffenden visuellen Kosmos. Man kann die Parameter so abstimmen, dass sich teilende Punkte wie Bakterienkolonien entstehen, verschlungene Filamente an Hirnkorallen erinnern, zebraartige Bänder oszillieren oder chaotische Turbulenzen aufflammen. Wenn du diese Raten mithilfe von Farbverläufen oder Textur-Maps über die Leinwand hinweg variierst, lassen sich ganz unterschiedliche Muster nahtlos in einem einzigen generativen Bild vereinen.
Biologische Bestätigung im Tier- und Pflanzenreich
Über Jahrzehnte hinweg stritten Biologen darüber, ob Morphogen-Gradienten nur eine elegante mathematische Spielerei oder ein echter Mechanismus lebender Organismen sind. Die moderne Entwicklungsbiologie hat Turings Reaktionsdiffusion mittlerweile eindrucksvoll bestätigt: Die Streifen des Zebrabärblings, der regelmäßige Abstand von Haarfollikeln und Federkeimen im Embryo sowie die Gaumenfalten bei Säugetieren entstehen genau durch solche Aktivator-Inhibitor-Netzwerke.
Darüber hinaus erklärt die Reaktionsdiffusion, wie Muster beim Wachsen mitwachsen. Vergrößert sich die Hautfläche eines heranwachsenden Tiers, teilt sich die Wellenlänge der chemischen Wellenfront: Einzelne Streifen verdoppeln sich oder brechen in Rosetten auf – genau wie man es bei wachsenden Kaiserfischen oder Großkatzen beobachten kann.
Generatives Gestalten mit Reaktionsdiffusion heute
In modernem Creative Coding wird Reaktionsdiffusion in Echtzeit über GPU-Shader und HTML5-Canvas simuliert – so verwandeln sich trockene Differenzialgleichungen in lebendige digitale Leinwände. Weil der Algorithmus dynamisch auf Umwelteinflüsse reagiert, experimentieren Designer gerne mit Hindernissen, interaktiven Pinselstrichen per Maus oder mehrkanaligen Farbpaletten, um organische Texturen zu schaffen, die gleichermaßen konstruiert wie lebendig wirken.
Ob für parametrische 3D-Fassaden, Textildesigns oder prozedurale Shader in der Spieleentwicklung: Die Reaktionsdiffusion schlägt die Brücke zwischen mathematischer Exaktheit und natürlicher Ästhetik. Sie beweist, dass die faszinierendsten Formen der Natur weder von Hand gezeichnet noch starr programmiert werden müssen – sie entstehen ganz von selbst aus dem Gleichgewicht von Werden, Ausbreiten und Begrenzen.
Häufig gestellte Fragen
Was ist der Unterschied zwischen einem Aktivator und einem Inhibitor?
Ein Aktivator regt seine eigene Produktion lokal an, während der Inhibitor das Wachstum des Aktivators hemmt. Da der Inhibitor viel schneller durch den Raum diffundiert als der Aktivator, grenzt er dessen Ausbreitung ein, sodass scharfe Punkte oder Streifen entstehen.
Warum ist das Gray-Scott-Modell in der generativen Kunst so beliebt?
Die Gray-Scott-Gleichungen bringen eine enorme Vielfalt an Formen hervor – von sich teilenden Flecken über Korallenstrukturen bis hin zu Labyrinthen –, und das allein durch das Feintuning zweier intuitiver Stellschrauben: Feed rate (F) und Kill rate (k).
Konnte Alan Turing die biologische Bestätigung seiner Theorie noch miterleben?
Nein, Turing veröffentlichte seine Arbeit 1952, kurz vor seinem Tod im Jahr 1954. Der eindeutige experimentelle Nachweis spezifischer Morphogene in lebendem Gewebe gelang erst Jahrzehnte später mit den Methoden der modernen Molekularbiologie.