
Padrões de Turing: A Matemática dos Animais
· 4 min de leitura
Redigido com assistência de IA. Encontrou um erro? Escreva para hello@geopatternlab.com.
Dos padrões labirínticos nas escamas do peixe-frade às pintas das onças e leopardos, a natureza constrói texturas complexas a partir de ciclos simples de realimentação química. A pioneira teoria da morfogênese de Alan Turing provou como duas substâncias em interação mútua conseguem quebrar a uniformidade inicial e estruturar formas organizadas espontaneamente.
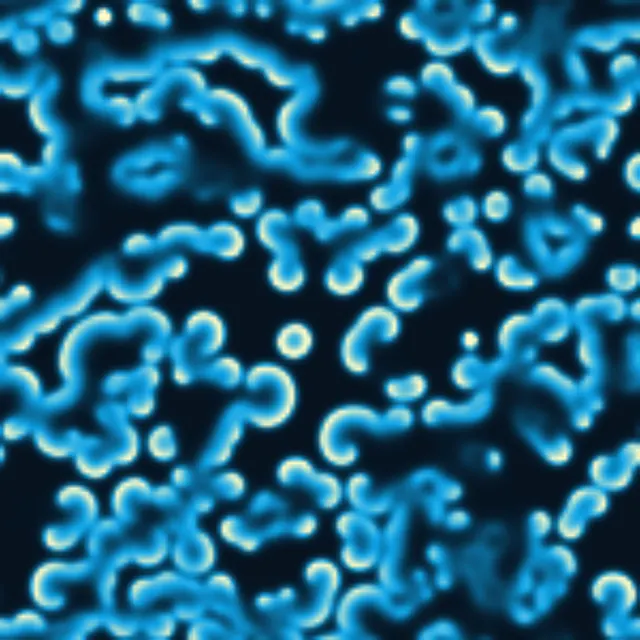 Experimente Reação-DifusãoReação química de Gray-Scott que gera manchas orgânicas, listras e estruturas de corais.
A Revolução da Morfogênese
Em 1952, o matemático Alan Turing publicou 'The Chemical Basis of Morphogenesis', voltando sua genialidade analítica para a biologia teórica. Turing intrigava-se com o mistério de como uma massa esférica, homogênea e simétrica de células podia se diferenciar de modo confiável em um organismo complexo, dotado de membros, eixos anatômicos e pigmentações distintas. Ele postulou que essas geometrias biológicas surgiam pela interação contínua de substâncias químicas hipotéticas chamadas morfógenos.
Em vez de supor a presença de um mapa anatômico microscópico preconcebido, Turing comprovou que reações químicas submetidas a dois fenômenos simultâneos — a reação molecular local e a difusão física pelo espaço — podiam sofrer instabilidades controladas. Essa quebra espontânea de simetria faz com que flutuações microscópicas e aleatórias na concentração dos compostos sejam amplificadas em estruturas periódicas duradouras, hoje consagradas como padrões de Turing.
A Dinâmica Ativador-Inibidor
O alicerce do conceito de Turing repousa em um sistema de dois elementos, comumente compreendidos como ativador e inibidor. O ativador estimula a síntese de si mesmo e, paralelamente, induz a formação do inibidor. O ponto determinante é que o agente inibidor se propaga pelo tecido com velocidade muito maior do que a do ativador. Essa dinâmica essencial ficou conhecida como ativação de curto alcance combinada com inibição de longo alcance.
À medida que o ativador se concentra em determinada região, desencadeia nos arredores uma onda de inibidor. Como o inibidor difunde rapidamente para as margens, ergue uma barreira química que impede novos focos de ativador nas vizinhanças imediatas. Onde a intensidade do inibidor decai, um novo centro de ativador ganha força. Dependendo das constantes de reação e coeficientes de difusão, essa disputa equilibrada estabelece formas variadas: pintas isoladas, meandros de labirinto, faixas lineares ou ondas contínuas.
O Modelo Gray-Scott na Arte Computacional
Enquanto as formulações de Turing utilizavam aproximações lineares, programadores visuais e designers generativos recorrem frequentemente ao modelo não linear de Gray-Scott, formulado na década de 1980. Na simulação de Gray-Scott, dois componentes virtuais, denominados U e V, difundem-se por uma grade bidimensional onde ocorre uma reação autocatalítica. O elemento U é introduzido continuamente a uma taxa de alimentação (feed rate), enquanto o composto V é descartado a uma taxa de decaimento (kill rate).
Pequenas variações nessas taxas de alimentação e eliminação descortinam comportamentos visuais surpreendentes. É possível ajustar parâmetros para obter pontos que se dividem por mitose como bactérias, filamentos sinuosos parecidos com corais cerebrais, listras onduladas semelhantes às de zebras ou estados caóticos turbulentos. Ao modular essas taxas pelo plano através de gradientes ou mapas de textura, artistas combinam múltiplos padrões orgânicos em uma mesma imagem.
Validação Biológica nos Seres Vivos
Por décadas após o artigo seminal de Turing, cientistas debateram se os gradientes de morfógenos representavam um mecanismo real ou apenas uma engenhosa abstração matemática. Avanços da biologia do desenvolvimento confirmaram que a reação-difusão atua ativamente na escultura de diversos tecidos naturais. As listras do peixe-zebra, o arranjo dos folículos pilosos e das penas em embriões e as cristas do céu da boca de mamíferos dependem diretamente de redes químicas com ativador e inibidor.
A dinâmica de reação-difusão esclarece ainda a evolução e adaptação das texturas corporais durante o crescimento biológico. Com o desenvolvimento do animal e o estiramento da pele, o comprimento de onda do equilíbrio químico se altera, fazendo com que faixas solitárias se dupliquem ou se fragmentem em rosetas, exatamente como se observa em peixes marinhos e grandes felinos ao longo da vida.
Aplicações Contemporâneas da Reação-Difusão
Hoje, artistas e programadores simulam o processo de reação-difusão instantaneamente por meio de shaders em WebGL e elementos canvas, convertendo cálculos diferenciais rigorosos em telas fluidas e pulsantes. Por reagir dinamicamente a estímulos espaciais, o algoritmo permite a inclusão de obstáculos, colisões com o ponteiro do mouse e esquemas cromáticos multicamada, gerando texturas que unem precisão computacional e expressividade viva.
Seja no relevo de painéis para arquitetura, em estampas têxteis ou no sombreamento procedural para videogames, os padrões de reação-difusão integram o rigor do código à fluidez orgânica. Mostram que as estruturas mais ricas da natureza dispensam ilustrações manuais ou planos exaustivos: bastam regras equilibradas de propagação, estímulo e contenção.
Perguntas frequentes
Qual é a diferença entre ativador e inibidor?
O ativador fomenta a sua própria produção localmente, enquanto o inibidor bloqueia o avanço do ativador. Como o inibidor se espalha muito mais rápido pelo meio, ele limita o crescimento do ativador, formando pintas ou faixas bem delimitadas.
Por que o modelo Gray-Scott é tão usado em arte generativa?
Porque ele sintetiza uma variedade impressionante de texturas vivas — como células em divisão, ramificações de corais e labirintos densos — manipulando apenas dois controles diretos: a taxa de alimentação e a taxa de decaimento.
Alan Turing viu a confirmação prática da sua teoria biológica?
Não, Turing publicou seu estudo fundamental em 1952, dois anos antes de morrer, em 1954. A identificação experimental dos morfógenos específicos no desenvolvimento de tecidos ocorreu somente muitas décadas depois, com a biologia molecular moderna.