
ミツバチの採餌
採餌バチは蜜の多い場所ほど長くダンスを踊り、待機中のハチがそれに従うことで、コロニー全体が最適な花を選び取ります。
- Hive
- Flower patch
- Forager, patch color
- Idle forager
- Waggle run
- Sun
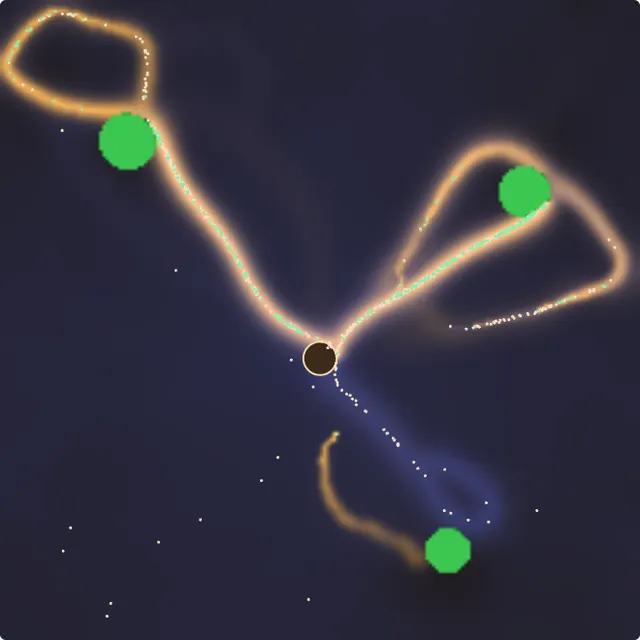
Foragers fly from the hive to the flower patches and dance for the richer ones; idle foragers follow a random dance. Drag a patch to move it, tap a patch to step its sugar, or tap open ground to add a patch, up to four; Rerun starts again from step 0 with the patches as you placed them.
ミツバチの採餌の使い心地はいかがですか?

ミツバチの採餌について
- モデル
- 蜜源間におけるダンス動員モデル(Camazine and Sneyd 1991)
- コロニー
- 採餌バチ50〜600匹、花畑最大4カ所
- 収益性
- 糖度 ÷ (1 + 距離 ÷ 1,000 m)、モデル設定値
- ダンスフロア
- 太陽に対する角度で表す8の字走行(von Frisch 1967)
- 標準的な結果
- 2,000ステップ後に稼働バチの90%以上が優良な花畑に集中
ミツバチの採餌は、個々のハチが花畑同士を直接比較することなく、群れ全体としてより豊かな花畑へと採餌バチを集中させる仕組みをシミュレートします。本ツールは、Thomas Seeley、Camazine、Sneydによる蜜源選択の給餌器実験とともに、Scott CamazineとJames Sneydが1991年に発表したモデルに基づいています。花畑から帰還した採餌バチは蜜を受け渡した後、花畑の収益性が高まるほど低くなる確率でその場所を放棄するか、収益性に応じて高まる確率と回数でダンスを踊り、再び飛び立ちます。ダンスフロアにいる待機バチはランダムな8の字ダンスに従うため、各花畑はダンス回数に比例して新たなハチを動員します。
ここでの収益性は、糖度を(1 + キロメートル単位の距離)で割った値です。例えば400 m先にある2.5 mol/Lの花畑の評価値は1.79となり、同距離にある1.0 mol/Lの花畑は0.71となります。Dance length(ダンスの長さ)が40の場合、前者は1回のダンスで26回の8の字走行を行い、後者は4回となります。蜜源の収益性に応じて8の字走行の回数が増加する現象は、Seeleyが1994年に計測しました。初期設定では、2,000ステップ後に稼働中の採餌バチの90%以上が2.5 mol/Lの花畑に集中します。Swap the feeders(給餌器の入れ替え)を有効にすると、3,000ステップ時点で花畑の糖度が入れ替わり、約1,600〜2,300ステップ以内にもう一方の花畑へと大半が移行します。
右上のインセットはダンスフロアを示しています。踊っている採餌バチは、対応する花畑の色の線で8の字走行を描きます。Karl von Frischの報告通り、真上が太陽方向を表し、垂直からの角度が太陽を基準とした花畑の方向を、線の長さが距離の遠さを示します。待機バチは灰色の点としてそこで待機します。グラフは各花畑の採餌バチの推移を記録し、情報欄には各花畑の採餌バチ数、直近500ステップのダンス回数、最も収益性の高い花畑にいる採餌バチの割合が表示されます。
ミツバチの採餌の使い方
- プリセットを選択. Two feeders(2つの給餌器)は、巣から400 m離れた反対側に1.0 mol/Lと2.5 mol/Lの花畑を配置します。Swap the feeders(給餌器の入れ替え)は同一構成で3,000ステップ時に糖度を入れ替えます。Near and far(近くと遠く)は200 mと800 mの位置に2.0 mol/Lの花畑を置きます。選択すると新規実行されます。
- 群れの選択を観察. 採餌バチは花畑の色の点となり、巣と花畑の間を往復します。右上のダンスフロアでは、より豊かな花畑に対するダンスが長く頻度も高くなるため、灰色の点である待機バチの多くがそれに従います。
- 花畑を変更. 花畑をドラッグして移動させると、距離と収益性が変化します。花畑をタップすると糖度が0.5から2.5 mol/Lの間で段階的に変化し、何もない地面をタップすると最大4カ所まで花畑を追加できます。
- 群れの設定を調整. Dance length(ダンスの長さ)で最良の花畑に対する8の字走行の回数を、Giving up(放棄率)で質の低い場所を放棄する確率を設定します。Dance lengthを0にすると新たな動員は行われません。Sun direction(太陽の方向)はダンスフロア上の角度を回転させます。各設定横の「?」で数値を解説しています。
- 結果を確認. 情報欄には各花畑の糖度、距離、採餌バチ数、直近500ステップのダンス回数、最良の花畑にいるハチの割合が表示されます。グラフでは各花畑の採餌バチ数の推移を確認できます。
- 再開または書き出し. Rerunは現在の花畑配置のままt = 0から再開し、Restartはプリセットの花畑に戻します。Resetは全設定を初期状態に戻します。PNGの保存、8秒間の録画(Record 8 seconds)、開始からの30秒録画が可能です。
よくある質問
ミツバチは訪れる花をどのように選ぶのですか?
個々のハチが花畑を比較することなく、群れ全体として選択します。各採餌バチは自身が訪れた花畑のみを評価し、収益性が高いほど長く踊り、低い場所は早く見切ります。待機バチはランダムにダンスを選んで追従します(Camazine and Sneyd 1991; Seeley, Camazine and Sneyd 1991)。このシミュレーションでは、2,000ステップ以内に稼働中の採餌バチの90%以上がより豊かな花畑へ移行します。
8の字ダンス(Waggle dance)とは何ですか?
採餌バチが巣板の上で体を小刻みに揺らしながら進む走行で、仲間に餌場の位置を伝える行動です。真上に対する走行の角度が太陽を基準とした餌場の方向を示し、走行時間が長いほど遠い場所であることを表します(von Frisch 1967)。本ツールのダンスフロアでも同様に各ランを描画します。
なぜ良い花ほど多く踊るのですか?
採餌バチのダンス規模が餌場の収益性に比例して大きくなるためです。Seeley(1994)は、蜜源の収益性が高いほど8の字走行の回数が増えることを発見しました。本モデルでDance lengthを40に設定した場合、400 m先の2.5 mol/Lの花畑では1回につき26回、1.0 mol/Lでは4回走行します。
より良い花畑が途中で変化した場合はどうなりますか?
群れ全体が新しい花畑へと追従します。Swap the feedersを有効にすると、3,000ステップで2つの花畑の糖度が入れ替わります。質が落ちた花畑のハチは放棄率が上がりダンスを減らし、質が上がった側のハチが活発に踊ることで、初期設定では約1,600〜2,300ステップで大半が移行します。
これは科学的なモデルですか?
CamazineとSneydの1991年モデルのメカニズムを視覚的に理解するための教育用モデルです。収益性の計算式(糖度 ÷ (1 + 距離 ÷ 1,000 m))、採餌バチが1ステップあたり5 m移動する速度、1回の8の字走行にかかる8ステップ、待機バチの追従確率などの数値はモデル用に調整された設定値です。
参考文献・資料
- von Frisch, K. (1967). The Dance Language and Orientation of Bees. Belknap Press of Harvard University Press.
- Camazine, S., & Sneyd, J. (1991). A model of collective nectar source selection by honey bees: self-organization through simple rules. Journal of Theoretical Biology 149(4), 547–571.
- Seeley, T. D., Camazine, S., & Sneyd, J. (1991). Collective decision-making in honey bees: how colonies choose among nectar sources. Behavioral Ecology and Sociobiology 28, 277–290.
- Seeley, T. D. (1994). Honey bee foragers as sensory units of their colonies. Behavioral Ecology and Sociobiology 34, 51–62.
- Seeley, T. D. (1995). The Wisdom of the Hive. Harvard University Press.